Belajar dari Pohon Clusia: Ilmuwan Ungkap Cara Tanaman Hemat Air Hadapi Kekeringan
Pendahuluan
Krisis air global kini menjadi salah satu ancaman paling nyata bagi keberlanjutan ekosistem daratan dan sektor agrikultur di seluruh dunia. Peningkatan suhu global serta pergeseran pola presipitasi memperpanjang periode kekeringan, memicu pengeringan tanah yang masif, dan menurunkan hasil panen komoditas pangan utama. Kekeringan bukan hanya membatasi akses air bagi manusia, melainkan juga menempatkan tekanan seleksi alam yang keras pada dunia flora. Bagi sebagian besar spesies tanaman, cekaman air berkepanjangan memicu stres osmotik, kegagalan hidrolik, penurunan fotosintesis, dan kematian jaringan tumbuhan secara massal.
Di tengah kondisi lingkungan yang semakin ekstrem, para ilmuwan botani dan fisiologi tumbuhan memusatkan perhatian pada mekanisme ketahanan alami yang telah berevolusi selama jutaan tahun. Salah satu model studi yang paling menarik adalah pohon dari genus Clusia. Genus tanaman tropis ini memiliki kemampuan adaptasi fisiologis luar biasa dalam merespons kekurangan air, menjadikannya kunci penting dalam memahami biologi ketahanan kekeringan.
Kemampuan unik Clusia untuk beralih jalur fotosintesis secara fleksibel dari metabolisme standar ke metabolisme hemat air membuka jalan baru bagi riset rekayasa genetika tanaman. Pemahaman mendalam mengenai arsitektur genetik dan biokimiawi pohon Clusia memberikan cetak biru bagi pengembangan varietas tanaman pangan masa depan yang mampu bertahan pada kondisi kekeringan ekstrem tanpa mengorbankan produktivitas biomassa.
1. Mengenal Genus Clusia dan Karakteristik Ekologisnya
1.1 Profil Morfologi dan Habitat Asli
Genus Clusia mencakup lebih dari 150 hingga 300 spesies tumbuhan berbunga yang tergolong dalam famili Clusiaceae. Sebagian besar anggota genus ini merupakan flora asli wilayah neotropis yang tersebar luas dari kawasan Amerika Tengah, Karibia, hingga hutan hujan Amazon dan habitat berbatu di Amerika Selatan. Spesies Clusia memperlihatkan keragaman bentuk hidup (habitus) yang fleksibel. Mereka dapat tumbuh sebagai epifit yang menumpang pada tajuk pohon tinggi, hemiepifit berakar gantung mirip pohon beringin, semak belukar, hingga pohon mandiri berukuran besar.
+-------------------------------------------------------------+
|              KERAGAMAN BENTUK HIDUP GENUS CLUSIA            |
+-------------------------------------------------------------+
|  1. Epifit       : Menempel pada tajuk kanopi tinggi        |
|  2. Hemiepifit   : Menumbuhkan akar pencekik menuju tanah   |
|  3. Pohon Mandiri: Tumbuh tegak di substrat batu dan tanah  |
+-------------------------------------------------------------+
Kemampuan adaptasi habitat ini memungkinkan Clusia mengolonisasi wilayah dengan ketersediaan hara dan air yang sangat terbatas. Di alam liar, pohon Clusia kerap dijumpai di tebing berbatu (inselberg), tanah berpasir tipis di pesisir pantai, dan kanopi hutan primer. Di zona kanopi atas, fluktuasi mikroklimat berlangsung sangat tajam: radiasi matahari sangat intens pada siang hari, kelembapan udara turun drastis, dan pasokan air bergantung penuh pada frekuensi hujan harian.
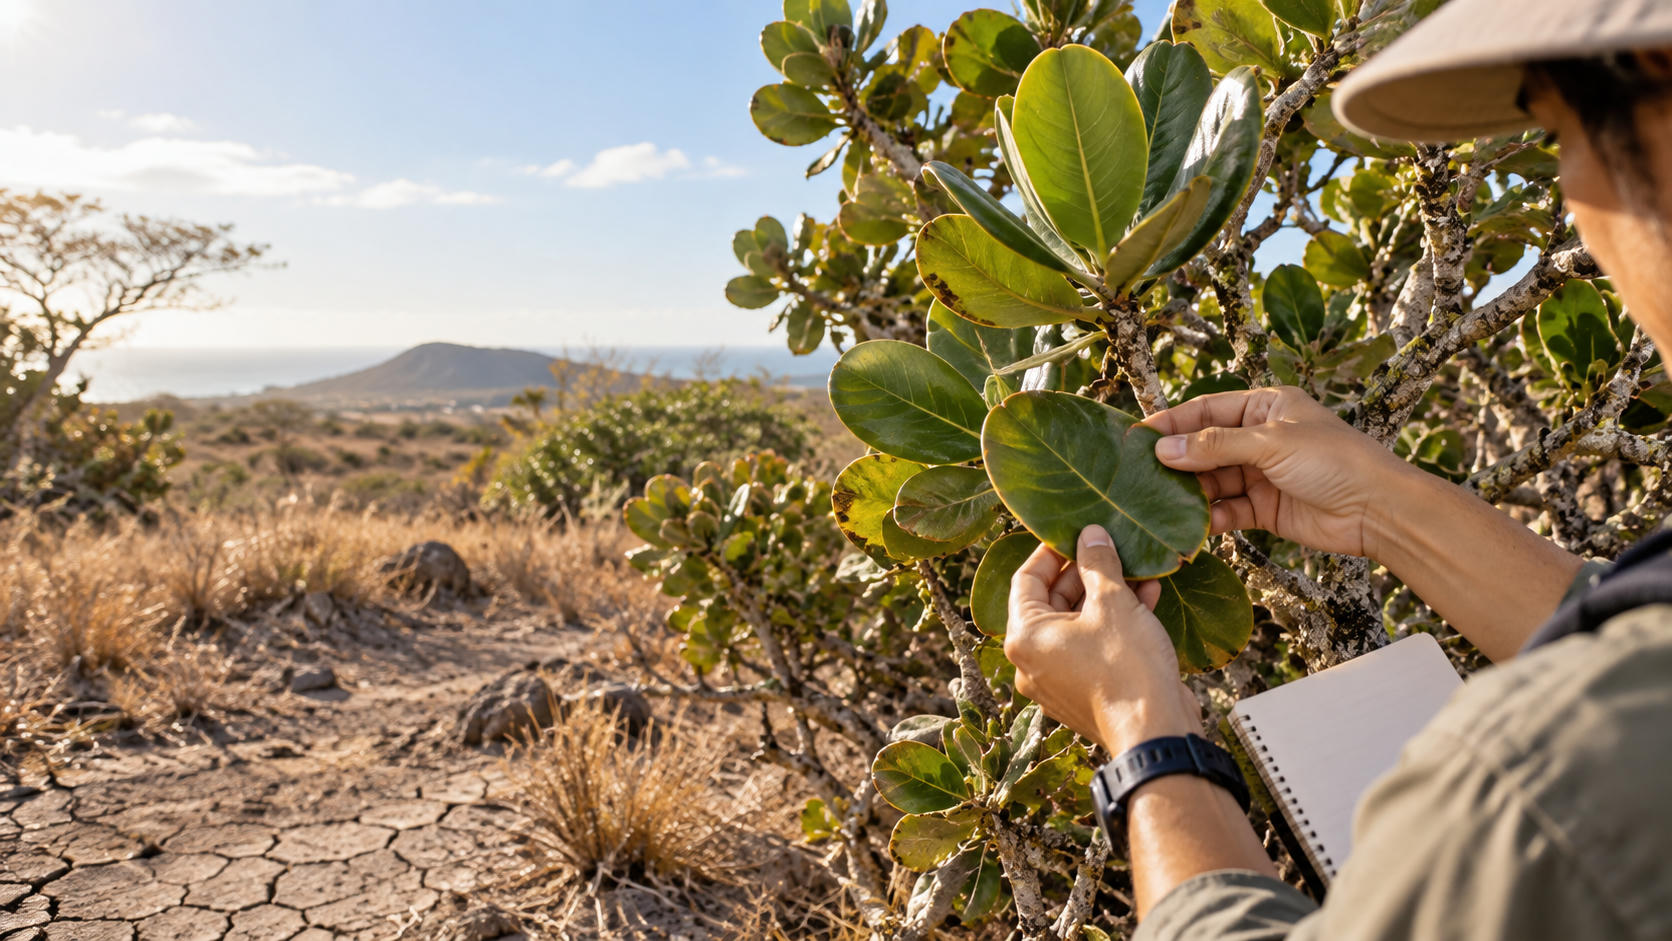
Secara morfologis, Clusia dicirikan oleh daun tebal berkulit (sukulen) yang tersusun berhadapan, getah lateks pekat, serta sistem perakaran udara yang kuat. Lateks pada batang dan daun berfungsi melindungi jaringan dari herbivora serta mengurangi hilangnya kelembapan ketika terjadi luka fisik pada tanaman.
1.2 Fleksibilitas Fisiologis yang Langka
Di dunia botani, sebagian besar spesies tumbuhan terikat secara kaku pada satu jenis jalur metabolisme fotosintesis sepanjang siklus hidupnya. Tumbuhan seperti padi atau gandum secara mutlak bergantung pada fotosintesis C3, sementara kaktus dan nanas bergantung pada jalur fotosintesis CAM (Crassulacean Acid Metabolism). Namun, genus Clusia menghadirkan pengecualian biologis yang unik karena menunjukkan plastisitas fenotipik dan metabolik tingkat tinggi.
Plastisitas ini mencakup kemampuan individu tanaman untuk mengubah fungsi internal sel dan jaringan daun secara dinamis saat merespons perubahan gradien lingkungan. Ketika air melimpah di musim hujan, tanaman Clusia beroperasi layaknya pohon tropis normal dengan fotosintesis C3. Begitu musim kemarau melanda dan kadar air tanah menyusut drastis, tanaman secara aktif mengalihkan seluruh mesin biokimiawinya ke mode CAM guna meminimalkan evaporasi.
       [Kondisi Air Melimpah]               [Kondisi Cekaman Air]
                 │                                    │
                 ▼                                    ▼
       ┌───────────────────┐                ┌───────────────────┐
       │   Fotosintesis    │                │   Fotosintesis    │
       │     Jalur C3      │ ──Transisi──>  │     Jalur CAM     │
       │ (Siang Hari Aktif)│ <─Reversibel─  │(Malam Hari Aktif) │
       └───────────────────┘                └───────────────────┘
Perbedaan respons adaptasi antara Clusia dan spesies pohon tropis lainnya terlihat jelas dalam efisiensi penggunaan air (Water-Use Efficiency / WUE). Pohon tropis konvensional biasanya merespons kekeringan dengan menutup stomata secara permanen di siang hari, yang berujung pada penurunan fiksasi karbon, pemanasan daun berlebih, dan potensi kegagalan fotosistem (photoinhibition). Sebaliknya, Clusia tetap mampu mengasimilasi karbon dioksida di malam hari meski stomata tertutup rapat di siang hari, mencegah kerusakan jaringan internal sekaligus mempertahankan kelangsungan hidupnya.
2. Mekanisme Hemat Air: Transisi Fotosintesis C3 ke CAM
2.1 Perbedaan Jalur Fotosintesis C3 dan CAM
Fotosintesis merupakan proses fundamental tanaman untuk mengubah energi cahaya matahari menjadi energi kimia dalam bentuk karbohidrat. Pada jalur konvensional C3, enzim ribulosa-1,5-bisfosfat karboksilase-oksigenase (RuBisCO) mengikat karbon dioksida ($CO_2$) langsung dari udara pada siang hari untuk membentuk senyawa berkarbon tiga (3-fosfogliserat). Karena RuBisCO bekerja di siang hari ketika stomata terbuka lebar, tanaman C3 kehilangan sejumlah besar molekul air melalui proses transpirasi. Untuk setiap molekul $CO_2$ yang diikat, tanaman C3 dapat kehilangan 400 hingga 500 molekul air ke atmosfer.
| Parameter Fisiologis | Jalur Fotosintesis C3 | Jalur Fotosintesis CAM (Clusia) |
|---|---|---|
| Waktu Pembukaan Stomata | Siang hari (saat ada cahaya) | Malam hari (saat gelap) |
| Enzim Pengikat $CO_2$ Utama | RuBisCO | Fosfoenolpiruvat Karboksilase (PEPC) |
| Kebutuhan Air per $CO_2$ Terikat | 400 – 500 $g\ H_2O\ /\ g\ CO_2$ | 50 – 100 $g\ H_2O\ /\ g\ CO_2$ |
| Penyimpanan Karbon Sementara | Tidak ada (langsung siklus Calvin) | Asam malat di vakuola sel |
| Toleransi terhadap Kekeringan | Rendah hingga sedang | Sangat tinggi |
Metabolisme Asam Krasulase (Crassulacean Acid Metabolism / CAM) merupakan adaptasi biokimiawi tingkat lanjut untuk meminimalkan kehilangan air tersebut. Melalui jalur CAM, tanaman memisahkan proses penangkapan $CO_2$ dan siklus reduksi karbon (Siklus Calvin) secara temporal (berdasarkan waktu). Karbon dioksida ditangkap pada malam hari dan disimpan secara intermediet, kemudian diproses menjadi glukosa pada siang hari berikutnya di balik stomata yang tertutup rapat.
2.2 Regulasi Pembukaan Stomata di Malam Hari
Pada ekosistem tropis dan semiarid, suhu udara malam hari turun signifikan bersamaan dengan naiknya kelembapan relatif udara. Kondisi atmosfer malam hari ini menghasilkan defisit tekanan uap air (Vapor Pressure Deficit / VPD) yang jauh lebih rendah dibandingkan siang hari. Pohon Clusia memanfaatkan jendela mikroklimat ini dengan membuka stomatanya secara selektif pada malam hari.
MALAM HARI (Stomata Terbuka, VPD Rendah):
Udara Luar ──[CO2]──> Enzim PEPC ──> Oksaloasetat ──> Asam Malat ──> Disimpan di Vakuola

SIANG HARI (Stomata Tertutup, Menghindari Penguapan):
Vakuola ──[Asam Malat]──> Dekarboksilasi ──> Pelepasan CO2 Internal ──> RuBisCO (Siklus Calvin)
Proses biokimiawi malam hari pada Clusia berjalan melalui tahapan berikut:
- Stomata membuka saat lingkungan gelap, mengizinkan $CO_2$ berdifusi ke dalam mesofil daun.
- Enzim sitosolik Fosfoenolpiruvat Karboksilase (PEPC) mengkatalisis fiksasi $CO_2$ ke dalam molekul fosfoenolpiruvat (PEP) untuk membentuk oksaloasetat.
- Oksaloasetat segera direduksi menjadi asam malat (malate) oleh enzim malat dehidrogenase.
- Asam malat ditranslokasikan ke dalam vakuola sel mesofil melalui pompa proton khusus dan disimpan dalam bentuk asam bebas sepanjang malam, menyebabkan rasa asam pada daun di pagi hari (nocturnal acidification).
Ketika matahari terbit, pohon Clusia segera menutup stomata untuk memutus jalur transpirasi air. Asam malat yang tersimpan di vakuola dikeluarkan kembali ke sitosol dan mengalami proses dekarboksilasi guna melepaskan $CO_2$ internal berkonsentrasi tinggi di sekitar enzim RuBisCO. Konsentrasi $CO_2$ yang pekat di dalam ruang antarsel menekan aktivitas oksigenasi oleh RuBisCO (fotorespirasi), meningkatkan efisiensi fotosintesis tanpa memerlukan pembukaan pori daun di bawah terik matahari.
2.3 Mekanisme Peralihan Berbasis Ketersediaan Air
Karakteristik penting dari spesies Clusia pratensis atau Clusia minor adalah sifat peralihannya yang fakultatif (C3-CAM facultative switching). Transisi dari jalur C3 ke CAM tidak bersifat permanen, melainkan diatur secara dinamis oleh ketersediaan air tanah dan potensial air jaringan (leaf water potential).
                      +-----------------------------+
                      |   Kondisi Awal: C3 Murni    |
                      +-----------------------------+
                                     │
                    [Cekaman Air / Potensial Air Turun]
                                     │
                                     ▼
                      +-----------------------------+
                      | Sinyal Hormonal ABA & Ca2+  |
                      +-----------------------------+
                                     │
                     [Aktivasi Transkripsi Gen CAM]
                                     │
                                     ▼
                      +-----------------------------+
                      |    Jalur CAM Aktif Penuh    |
                      +-----------------------------+
                                     │
                        [Irigasi / Hujan Kembali]
                                     │
                                     ▼
                      +-----------------------------+
                      |   Reversi Kembali ke C3     |
                      +-----------------------------+
Ketika tanah mengering, penurunan turgor sel mesofil memicu kaskade sinyal internal. Tanaman mulai mengurangi asimilasi $CO_2$ di siang hari dan secara bertahap mengaktifkan serapan $CO_2$ malam hari. Fase transisi ini berlangsung cepat dalam hitungan hari. Sistem ini sepenuhnya reversibel: begitu hujan turun atau tanah kembali lembap, Clusia menonaktifkan jalur CAM dalam kurun waktu 24 hingga 48 jam dan kembali berfotosintesis secara C3 murni. Kemampuan mematikan jalur CAM ketika air melimpah memberi keuntungan metabolik besar karena jalur CAM membutuhkan investasi energi tambahan untuk transportasi ion dan sintesis enzim khusus.
3. Temuan Kunci Para Ilmuwan tentang Clusia
3.1 Identifikasi Gen dan Jalur Pensinyalan
Kemajuan dalam teknik sekuensing genom dan transkriptomik memungkinkan para ilmuwan mengurai peta genetik di balik fleksibilitas Clusia. Salah satu temuan terpenting adalah peran sentral hormon asam absisat (Abscisic Acid / ABA) dalam modulasi transisi metabolik.
       Kekeringan (Stres Air)
                 │
                 ▼
       Akumulasi Hormon ABA
                 │
        ┌────────┴────────┐
        ▼                 ▼
 Penutupan Stomata   Aktivasi Kinase PEPC
   (Siang Hari)      (Fosforilasi Malam Hari)
Akumulasi ABA saat terjadi cekaman air mengaktifkan serangkaian faktor transkripsi spesifik yang meregulasi ekspresi gen struktural fotosintesis CAM, antara lain:
- PEPC Kinase (PPCK): Gen pengode enzim kinase yang bertanggung jawab memfosforilasi PEPC pada malam hari. Fosforilasi ini membuat PEPC aktif dan kebal terhadap inhibisi umpan balik oleh asam malat yang terakumulasi di sitoplasma.
- Transporter Malat Vakuolar (ALMT / TDT): Protein saluran ion pada membran tonoplas vakuola yang diatur secara presisi untuk memompa dan mengalirkan kembali malat sesuai ritme sirkadian siang-malam.
- Enzim Dekarboksilasi (PPDK atau NADP-ME): Enzim pemecah asam organik di siang hari yang diaktifkan selaras dengan penyinaran cahaya matahari.
Pohon Clusia tidak menciptakan gen baru yang sepenuhnya asing untuk melakukan CAM; sebaliknya, Clusia menyusun ulang (re-wiring) pola ekspresi, regulasi sirkadian, dan sensitivitas gen purba yang sudah ada pada tanaman C3 biasa.
3.2 Adaptasi Struktur Daun dan Jaringan Air
Keberhasilan mekanisme CAM pada Clusia didukung kuat oleh anatomi daun yang terspesialisasi guna mencegah desikasi jaringan secara pasif.
+-------------------------------------------------------------+
|              STRUKTUR LAPISAN PENAMPANG DAUN CLUSIA         |
+-------------------------------------------------------------+
| [===] Kutikula Tebal (Lapisan Lilin Hidrofobik Ekstrem)     |
| [---] Epidermis Atas Multi-Lapis                            |
| [ooo] Hidrenkim (Jaringan Penyimpan Air Tanpa Kloroplas)    |
| [***] Klorenkim (Mesofil Fotosintetik Aktif, Vakuola Besar) |
| [---] Epidermis Bawah & Stomata Terlindungi                 |
| [===] Kutikula Bawah                                        |
+-------------------------------------------------------------+
Pertama, permukaan daun dilapisi oleh lapisan kutikula tebal dengan campuran senyawa lilin hidrofobik epikutikular. Lapisan ini menurunkan konduktansi kutikular hingga mendekati nol, memastikan penguapan residual air melalui dinding sel epidermis dapat dicegah saat stomata tertutup rapat di siang hari.
Kedua, daun Clusia memiliki jaringan khusus penyimpan air yang disebut hydrenchyma (hidrenkim), berdampingan dengan jaringan fotosintetik (chlorenchyma). Hidrenkim tersusun atas sel-sel parenkim berdinding tipis dan fleksibel dengan vakuola berukuran besar. Selama periode kering, hidrenkim menyuplai air secara osmotik ke jaringan klorenkim fotosintetik guna mempertahankan turgor sel dan menjaga kelangsungan reaksi biokimiawi CAM. Fleksibilitas dinding sel hidrenkim memungkinkan jaringan mengerut saat air diserap dan mengembang kembali seketika saat air tersedia tanpa mengalami kerusakan mekanis.
4. Aplikasi Riset untuk Rekayasa Tanaman Masa Depan
4.1 Rekayasa Hayati Tanaman Pangan Tahan Kering
Penemuan sirkuit regulasi genetik pada Clusia menjadi batu loncatan penting bagi proyek bioteknologi tanaman global, khususnya rekayasa CAM (CAM bioengineering). Mayoritas komoditas pangan pokok dunia seperti padi (Oryza sativa), gandum (Triticum aestivum), dan kedelai (Glycine max) merupakan tanaman C3 yang rentan terhadap kekeringan.
                    +-----------------------------+
                    |   Genom Padi / Gandum (C3)  |
                    +-----------------------------+
                                   │
                   [Penyisipan Gen Modul CAM Clusia]
                     - Sirkuit PEPC & PEPC Kinase
                     - Pengatur Ritme Sirkadian
                     - Transporter Tonoplas Vakuola
                                   │
                                   ▼
                    +-----------------------------+
                    |  Tanaman Pangan C3-CAM      |
                    |        Fakultatif           |
                    +-----------------------------+
                                   │
                ┌──────────────────┴──────────────────┐
                ▼                                     ▼
     Efisiensi Penggunaan Air             Ketahanan Cekaman Air
     Meningkat Hingga 300-500%             pada Lahan Kering
Tujuan utama para ilmuwan adalah mentransfer modul genetik fotosintesis CAM fakultatif dari Clusia ke dalam tanaman budidaya C3. Karena Clusia membuktikan transisi C3-CAM dapat terjadi secara fleksibel pada kerangka genetik yang serupa, rekayasa tanaman pangan menjadi tanaman C3-CAM fakultatif sintetis dinilai sangat realistis.
Jika tanaman padi dapat direkayasa untuk mengaktifkan jalur CAM sementara saat air irigasi mengering, efisiensi penggunaan air (Water-Use Efficiency) tanaman pangan dapat melonjak 300% hingga 500%. Langkah ini berpotensi mengamankan panen dari ancaman kekeringan musiman mendadak tanpa menurunkan potensi rendemen gabah saat musim hujan.
4.2 Mitigasi Dampak Perubahan Iklim Global
Aplikasi praktis riset fotosintesis Clusia memegang peranan krusial dalam adaptasi sektor pertanian menghadapi krisis iklim global. Model agrikultur masa depan dituntut untuk memproduksi lebih banyak biomassa dan pangan di tengah lahan yang semakin terdegradasi dan pasokan air tawar yang menipis.
Strategi pemanfaatan teknologi berbasis CAM meliputi:
- Perluasan Wilayah Budidaya ke Lahan Marginal: Tanaman hasil rekayasa genetik dapat ditanam di tanah semikering, gurun beririgasi rendah, atau lahan berpasir yang sebelumnya dinilai tidak produktif untuk pertanian pangan.
- Reduksi Konsumsi Air Irigasi: Mengurangi ketergantungan sektor agrikultur terhadap air tanah dan bendungan irigasi skala besar, menyisakan cadangan air tawar untuk kebutuhan ekologis dan sanitasi masyarakat.
- Peningkatan Ketahanan terhadap Suhu Tinggi: Penutupan stomata di siang hari melindungi tanaman dari stres panas ekstrem dan dehidrasi jaringan ketika gelombang panas (heatwave) melanda sentra-sentra produksi pertanian.
Kesimpulan
Pohon Clusia merupakan salah satu bukti adaptasi evolusi tanaman di zona tropis. Melalui kombinasi plastisitas fisiologis, peralihan jalur fotosintesis C3 ke CAM yang fleksibel dan reversibel, regulasi stomata nokturnal yang presisi, serta dukungan anatomi daun yang unggul, Clusia mampu bertahan hidup di habitat kering dan berbatu.
Penelitian regulasi genetik dan biokimiawi pada genus Clusia memberikan pemahaman fundamental bagi sains modern. Keberhasilan memetakan cara tanaman ini bertransisi antarjalur metabolik membuka jalan baru bagi rekayasa genetika tanaman pangan hemat air demi memperkuat ketahanan pangan global di tengah tantangan krisis iklim.
Pertanyaan yang Sering Diajukan (FAQ)
Apa itu pohon Clusia dan mengapa tanaman ini menarik perhatian ilmuwan?
Clusia adalah genus tanaman tropis yang unik karena memiliki fleksibilitas metabolisme untuk beralih antara fotosintesis C3 biasa dan CAM, menjadikannya model utama dalam penelitian efisiensi penggunaan air tanaman.
Bagaimana cara pohon Clusia menghemat air saat terjadi kekeringan?
Pohon Clusia menutup stomata pada siang hari untuk mencegah penguapan dan membukanya pada malam hari guna menyerap $CO_2$, yang kemudian disimpan dalam bentuk asam organik hingga matahari terbit.
Apa perbedaan utama fotosintesis C3 dan CAM pada Clusia?
Fotosintesis C3 membuka stomata di siang hari dengan risiko kehilangan air yang tinggi, sedangkan CAM membuka stomata di malam hari saat suhu lebih dingin dan kelembapan lebih tinggi, menghasilkan efisiensi air yang jauh lebih besar.
Apakah sifat hemat air pohon Clusia dapat diterapkan pada tanaman pangan?
Para ilmuwan meneliti rekayasa genetika untuk menyisipkan sirkuit genetik CAM dari tanaman seperti Clusia ke tanaman pangan C3 agar mampu bertahan pada kondisi kekeringan tanpa kehilangan produktivitas.
Apakah semua spesies Clusia memiliki kemampuan beralih ke jalur CAM?
Tidak semua. Sebagian spesies Clusia merupakan tanaman C3 obligat, sebagian CAM obligat, dan spesies tertentu bersifat C3-CAM fakultatif yang dapat beralih sesuai ketersediaan air lingkungan.